Cuando hablamos de microbiota intestinal, hay nombres que se han convertido casi en protagonistas habituales: Lactobacillus, Bifidobacterium, Saccharomyces… Son microorganismos que ya forman parte del lenguaje cotidiano de la suplementación y de la práctica clínica.
Sin embargo, la investigación sobre microbiota está poniendo el foco también en bacterias menos conocidas que pueden aportar algo diferente. Una de ellas es Propionibacterium freudenreichii, una bacteria tradicionalmente vinculada a la elaboración de quesos de tipo suizo que, desde hace décadas, despierta interés por su capacidad para sobrevivir al tránsito gastrointestinal, producir ácidos grasos de cadena corta y generar compuestos capaces de influir en otras bacterias y en la respuesta del huésped.
Lo interesante, por tanto, no es simplemente que podamos encontrarla en un complemento alimenticio. Lo verdaderamente interesante es comprender qué hace esta bacteria y qué ocurre en el intestino cuando entra en contacto con un ecosistema microbiano mucho más complejo que ella misma.
La literatura científica disponible permite dibujar una imagen cada vez más completa: P. freudenreichii puede sobrevivir al tránsito digestivo, interactuar con la microbiota, favorecer determinadas poblaciones de Bifidobacterium y participar, mediante sus metabolitos y proteínas de superficie, en mecanismos relacionados con la mucosa intestinal y la inmunidad.
Una bacteria nacida en el mundo del queso
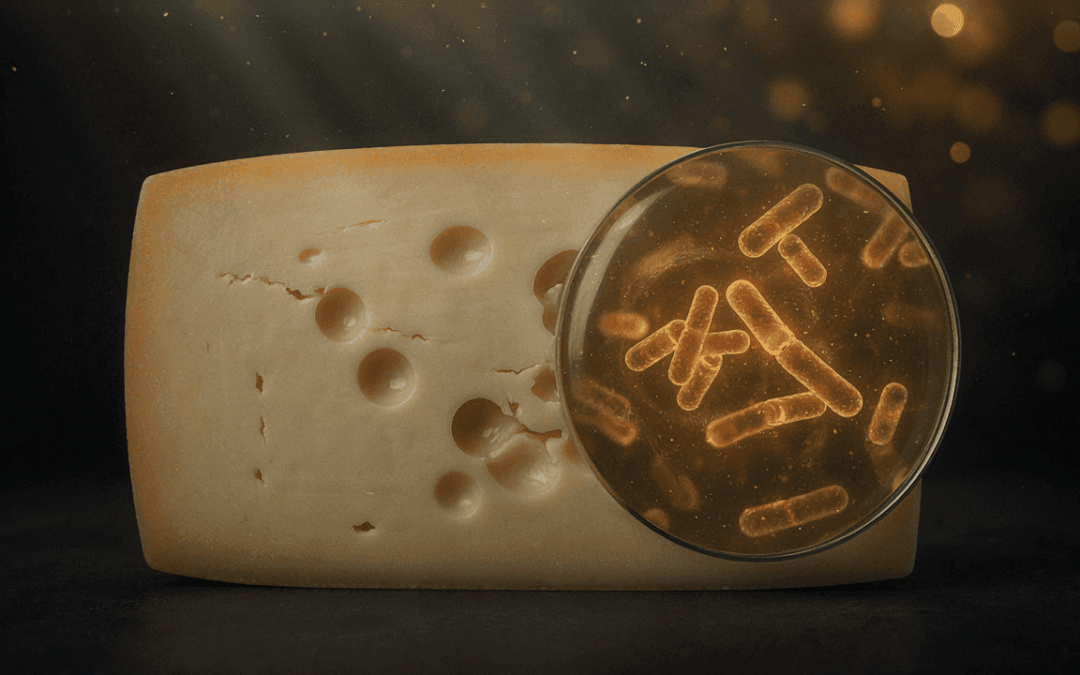
Propionibacterium freudenreichii pertenece al grupo de las llamadas propionibacterias lácteas. Su relación con la alimentación no es reciente: participa tradicionalmente en la maduración de los quesos de tipo suizo y contribuye a la formación de sus características «ojos» o cavidades, consecuencia de la producción de dióxido de carbono durante la fermentación.
Pero existe otro producto de su metabolismo que explica gran parte de su interés actual: el propionato.
Las propionibacterias utilizan diferentes sustratos, entre ellos el lactato, y mediante su particular metabolismo de fermentación propiónica generan principalmente propionato y acetato, además de otros productos como succinato y dióxido de carbono. Esta actividad metabólica es una de las características que diferencia a P. freudenreichii de muchos de los microorganismos probióticos más estudiados.
El resultado es una bacteria cuya posible actividad biológica no depende únicamente de «estar presente» en el intestino. Parte de su interés está en los compuestos que genera y en las interacciones que establece con el entorno intestinal.
El propionato: cuando la actividad bacteriana se convierte en metabolitos
El propionato pertenece al grupo de los ácidos grasos de cadena corta o SCFA, junto al acetato y el butirato.
Los SCFA son uno de los principales productos de la fermentación microbiana intestinal y participan en numerosas interacciones entre microbiota, epitelio y organismo. En el caso de P. freudenreichii, el propionato constituye uno de sus productos metabólicos característicos y puede contribuir a modificar el entorno intestinal y a señalizar a través de receptores sensibles a estos metabolitos.
Pero reducir el interés de P. freudenreichii al propionato sería quedarse a mitad de camino.
Esta bacteria produce también otros compuestos de interés, entre ellos DHNA (1,4-dihidroxi-2-naftoico), una molécula especialmente estudiada por su actividad bifidogénica; además de otras sustancias y proteínas implicadas en la interacción con el huésped.
Y aquí aparece uno de los conceptos más interesantes de toda esta literatura: P. freudenreichii puede influir en la microbiota sin necesidad de convertirse en una población dominante dentro de ella.
Una bacteria que puede favorecer a otras bacterias
La relación entre P. freudenreichii y Bifidobacterium está documentada desde hace décadas.
Diversos trabajos in vitro identificaron factores producidos por P. freudenreichii capaces de estimular el crecimiento de bifidobacterias. Entre ellos destaca el DHNA, cuya actividad bifidogénica ha sido estudiada en diferentes modelos y cuya presencia contribuye a explicar por qué la bacteria puede ejercer efectos sobre el ecosistema intestinal más allá de su propia supervivencia.
La cuestión se vuelve todavía más interesante cuando pasamos del laboratorio a las personas.
En un estudio publicado en Scandinavian Journal of Gastroenterology, 18 adultos sanos recibieron durante dos semanas 5 × 10¹⁰ UFC diarias de dos cepas de P. freudenreichii. Parte de las bacterias ingeridas pudo recuperarse en las heces durante la suplementación, demostrando que una proporción de ellas sobrevivía al tránsito digestivo. Al mismo tiempo, se observó un aumento significativo de las bifidobacterias fecales, que alcanzó aproximadamente 0,8 log respecto a los valores basales y se mantuvo incluso durante la primera semana posterior a la suplementación.
Este resultado tiene interés por dos motivos.
El primero es que confirma que determinadas propionibacterias pueden superar el tránsito gastrointestinal y llegar viables al intestino. El segundo es que permite observar una modificación del ecosistema asociada a su consumo.
No obstante, los propios investigadores señalan que la bacteria no parece convertirse en un miembro permanente de la flora intestinal: sus niveles fecales regresaron a los valores basales después de suspender la suplementación. Esto es importante porque nos aleja de una idea demasiado simplista de «colonización».
La cuestión podría ser menos «hacer que esta bacteria colonice el intestino» y más introducir un microorganismo capaz de interactuar con el ecosistema mientras está presente.
Supervivencia digestiva: una propiedad fundamental
Para que una bacteria administrada por vía oral pueda ejercer algún efecto en el intestino, primero debe superar una sucesión de condiciones adversas: acidez gástrica, sales biliares, cambios osmóticos y disponibilidad limitada de nutrientes.
La literatura sobre propionibacterias lácteas muestra que P. freudenreichii presenta una notable tolerancia a estas condiciones. Diferentes estudios han documentado resistencia a pH ácido y a sales biliares, así como respuestas adaptativas que mejoran su supervivencia frente a estas condiciones. También se ha demostrado supervivencia durante el tránsito gastrointestinal tanto en modelos animales como en humanos.
Esta capacidad tiene además una base fisiológica interesante. La bacteria puede activar mecanismos de adaptación al estrés y acumular compuestos como trehalosa, relacionados con la protección frente a condiciones ambientales adversas. La literatura describe incluso cómo determinadas condiciones de adaptación pueden aumentar su viabilidad durante procesos de secado y posterior exposición a estrés gastrointestinal.
Para un microorganismo destinado a ser administrado por vía oral, no es un detalle menor: la actividad potencial comienza por la capacidad de llegar al lugar donde queremos que actúe.
Pero P. freudenreichii no solo interactúa con otras bacterias
Otro de los campos que más ha crecido en los últimos años es el estudio de la interacción directa entre P. freudenreichii y las células intestinales.
Aquí adquieren protagonismo determinadas proteínas presentes en la superficie bacteriana, especialmente las proteínas de la capa superficial o S-layer.
Una de las más estudiadas es SlpB.
En investigaciones con determinadas cepas, como CIRM-BIA 129, SlpB se ha relacionado con la adhesión a células epiteliales intestinales y con efectos inmunomoduladores. Estudios proteómicos han identificado proteínas de superficie capaces de participar en la interacción con las células del huésped, mientras que experimentos con mutaciones de SlpB han ayudado a determinar su importancia funcional.
Lo más interesante es que estos mecanismos no parecen limitarse a una simple adhesión física.
En modelos experimentales, P. freudenreichii CIRM-BIA129 ha mostrado capacidad para modular determinadas respuestas inflamatorias, y la proteína SlpB ha sido implicada en estos efectos. También se han estudiado vesículas extracelulares producidas por la bacteria que contienen proteínas de superficie relacionadas con la modulación de vías inflamatorias como NF-κB.
Otros trabajos han identificado además proteínas como LspA y su interacción con receptores implicados en la regulación de células dendríticas y en el mantenimiento de la homeostasis intestinal.
Es aquí donde la historia de P. freudenreichii deja de ser únicamente una historia sobre microbiota y empieza a convertirse también en una historia sobre comunicación microbiota-mucosa-inmunidad.
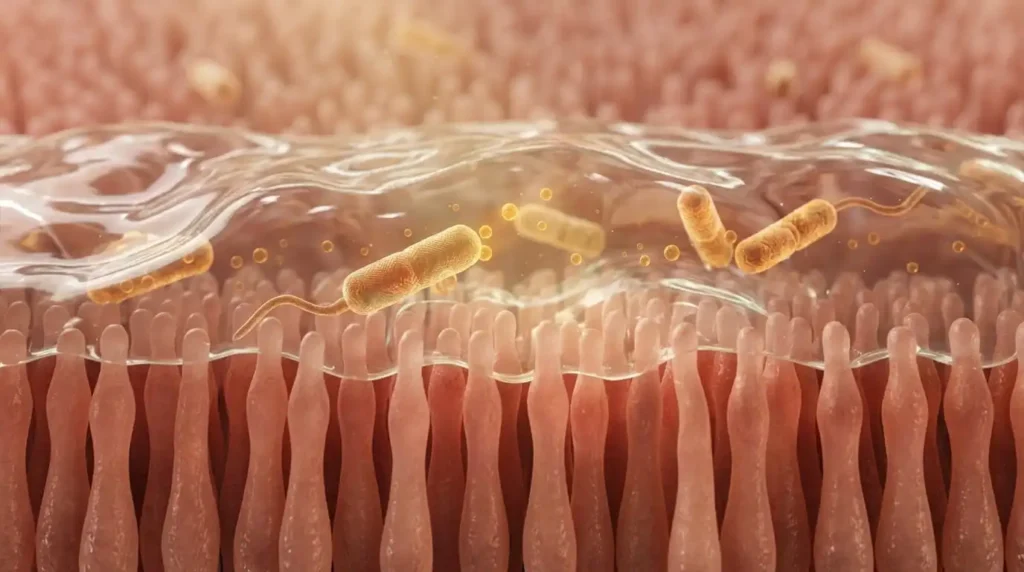
Del microorganismo a la barrera intestinal
La barrera intestinal no es simplemente una pared física. Está formada por el epitelio, las uniones intercelulares, el mucus y una compleja red de señales inmunitarias y metabólicas.
En modelos experimentales, distintas cepas de P. freudenreichii han mostrado efectos sobre algunos de estos elementos.
Por ejemplo, una investigación con P. freudenreichii KCTC 1063 observó una mejoría de la colitis experimental asociada a una mayor expresión de MUC2, una de las principales mucinas presentes en el intestino.
Otros trabajos con CIRM-BIA129 han observado preservación de proteínas relacionadas con las uniones estrechas y una menor respuesta inflamatoria en modelos animales de colitis o mucositis. La implicación de SlpB en estos efectos ha sido estudiada específicamente mediante modelos de pérdida de función.
Es una línea de investigación prometedora, pero aquí conviene mantener una distinción esencial: estos resultados proceden principalmente de modelos preclínicos y de cepas concretas.
No permiten afirmar que cualquier preparación de P. freudenreichii produzca estos mismos efectos en humanos.
Sí permiten, en cambio, entender por qué esta especie está despertando interés científico: existen mecanismos biológicos plausibles y cada vez mejor caracterizados que conectan la bacteria con la función de la mucosa y la respuesta inmunitaria.
¿Y qué sucede en humanos?
La evidencia clínica es probablemente la parte que requiere una lectura más cuidadosa.
Existen estudios en humanos que han observado supervivencia gastrointestinal, cambios en las poblaciones fecales de bifidobacterias, modificaciones de determinados metabolitos y cambios en algunos parámetros relacionados con el tránsito intestinal.
En diferentes trabajos, la administración de P. freudenreichii se ha relacionado con un aumento de la frecuencia de deposiciones. El estudio de Hojo et al., por ejemplo, investigó una preparación con la cepa ET-3 en mujeres sanas y describió cambios en la microbiota y en la frecuencia de las deposiciones. Otros estudios en personas mayores también han observado modificaciones de este parámetro.
El trabajo de Bouglé et al. añadió otra pieza interesante al puzzle al observar cambios en el tiempo de tránsito segmentario del colon después de la suplementación, aunque el efecto no fue uniforme en todos los segmentos y los autores señalaron que el mecanismo responsable no estaba establecido.
También existen investigaciones con productos derivados del metabolismo de P. freudenreichii. El llamado bifidogenic growth stimulator (BGS), producido por la cepa ET-3 y rico en factores como DHNA, ha sido estudiado en humanos y en determinados contextos clínicos. En un pequeño estudio abierto realizado en pacientes con colitis ulcerosa activa, la administración de BGS se asoció a una mejoría de índices clínicos y endoscópicos y a un incremento del butirato fecal. Sin embargo, el estudio fue pequeño y no controlado, por lo que los propios autores indicaron la necesidad de ensayos controlados antes de establecer su eficacia.
Por tanto, la evidencia clínica es interesante, pero todavía heterogénea.
Y existe una razón importante.
En probióticos, la especie no lo explica todo
Uno de los mensajes que merece la pena trasladar al profesional es que no deberíamos tratar a todas las cepas de una misma especie como si fueran equivalentes.
La investigación sobre P. freudenreichii muestra diferencias entre cepas en la producción de proteínas de superficie, metabolitos y respuestas frente a diferentes condiciones. De hecho, trabajos de proteómica han demostrado que incluso cepas estrechamente relacionadas pueden presentar perfiles de secreción muy diferentes.
Esto significa que un resultado obtenido con ET-3 no puede atribuirse automáticamente a CIRM-BIA129; ni un efecto observado con la cepa JS puede darse por demostrado para cualquier otro preparado.
Es una consideración especialmente importante en la lectura de la literatura científica sobre probióticos.
La revisión de Cousin et al. ya advertía en 2010 de que buena parte de los ensayos clínicos con propionibacterias lácteas se habían realizado utilizando combinaciones de microorganismos, y que faltaban estudios clínicos que permitiesen atribuir de forma inequívoca determinados beneficios exclusivamente a estas bacterias.
Por eso, quizá la forma más adecuada de describir actualmente P. freudenreichii sea hablar de una bacteria con un interesante potencial funcional y una base mecanística cada vez mejor caracterizada, pero cuya aplicación clínica específica todavía requiere investigación adicional.
Entonces, ¿por qué resulta tan interesante?
Porque reúne varias características que raramente se encuentran explicadas juntas.
Por un lado, presenta una capacidad demostrada para sobrevivir al tránsito gastrointestinal. Por otro, produce metabolitos como propionato y acetato y compuestos bifidogénicos como DHNA. Además, algunas cepas pueden adherirse a estructuras de la mucosa y expresar proteínas capaces de interactuar con células intestinales e inmunitarias.
Su posible actividad, por tanto, no parece responder a un único mecanismo.
Podríamos imaginarla como una especie de intermediario metabólico dentro del ecosistema intestinal: llega al intestino, produce compuestos que modifican el entorno, interactúa con otras bacterias y puede establecer determinadas interacciones con el huésped.
Esta visión encaja cada vez mejor con la evolución del propio concepto de microbiota. Ya no se trata únicamente de preguntar «qué bacterias hay», sino de comprender qué funciones desempeñan, qué metabolitos producen y cómo se comunican entre ellas y con el organismo.
¿Dónde encaja Optim Propionibacter?
Desde esta perspectiva es más fácil contextualizar Optim Propionibacter.
Se trata de un complemento alimenticio a base de Propionibacterium freudenreichii subsp. shermanii, una propionibacteria tradicionalmente vinculada a la elaboración de quesos de tipo suizo.
Como ocurre con cualquier microorganismo probiótico, la interpretación de la literatura debe hacerse teniendo en cuenta la cepa concreta, la cantidad administrada, el vehículo y el contexto de cada estudio. Los resultados obtenidos con cepas experimentales como ET-3, JS o CIRM-BIA129 deben entenderse como parte de la evidencia científica de la especie y no como estudios clínicos específicos realizados con Optim Propionibacter.
Y precisamente ahí está el valor de conocer la literatura: permitir que el profesional pueda valorar dónde existe evidencia, dónde existe plausibilidad biológica y dónde todavía necesitamos más investigación.
Una bacteria para seguir de cerca
Propionibacterium freudenreichii nos recuerda que la microbiota intestinal es mucho más compleja que una colección de «bacterias buenas y malas».
Es una bacteria con una larga historia en la alimentación y un metabolismo particular que la convierte en una fuente de propionato y otros compuestos bioactivos. La investigación ha demostrado que algunas cepas pueden sobrevivir al tránsito gastrointestinal, favorecer el crecimiento de bifidobacterias y participar en interacciones con el epitelio intestinal y el sistema inmunitario.
Los estudios en humanos son todavía menos numerosos que los realizados con los probióticos más conocidos, y en muchos casos utilizan preparaciones multicepa o productos derivados del cultivo bacteriano. Sin embargo, los resultados disponibles, junto con la evidencia mecanística y preclínica, hacen de P. freudenreichii un microorganismo especialmente interesante para seguir investigando.
Porque quizá su verdadero interés no esté en convertirse en «la próxima gran bacteria probiótica».
Quizá esté en algo más sofisticado: demostrar que modificar la microbiota no significa únicamente añadir microorganismos, sino también introducir nuevas capacidades metabólicas y nuevas formas de comunicación dentro de un ecosistema dinámico. Y ese cambio de perspectiva puede ser precisamente uno de los pasos más interesantes que está dando la ciencia de la microbiota.